Nat Rev Dis Primers重磅综述 | 细胞因子风暴
摘要 细胞因子风暴是指因免疫反应过度激活导致循环系统中细胞因子水平升高的一系列临床表现,可能造成组织和器官损伤甚至致命。细胞因子风暴可由多种潜在临床状况诱发,包括感染、自身炎症和自身免疫性疾病、单基因病因或治疗干预,诊断和治疗十分困难。然而,研究已确定了指导治疗策略的保守分子机制。细胞因子风暴由细胞因子产生启动,并通过细胞因子与炎症性细胞死亡( PANoptosis)之间的自我放大正反馈环路加剧。…
摘要
细胞因子风暴是指因免疫反应过度激活导致循环系统中细胞因子水平升高的一系列临床表现,可能造成组织和器官损伤甚至致命。细胞因子风暴可由多种潜在临床状况诱发,包括感染、自身炎症和自身免疫性疾病、单基因病因或治疗干预,诊断和治疗十分困难。然而,研究已确定了指导治疗策略的保守分子机制。细胞因子风暴由细胞因子产生启动,并通过细胞因子与炎症性细胞死亡(PANoptosis)之间的自我放大正反馈环路加剧。该过程始于细胞检测到触发因素并经历炎症信号传导,通过经典分泌途径或通过焦亡和泛凋亡等裂解性细胞死亡产生并释放细胞因子。这种炎症性细胞因子的释放随后可通过旁分泌泛凋亡驱动邻近细胞的炎症和细胞死亡,从而导致进一步的细胞因子释放并放大该循环。深入理解驱动细胞因子风暴的分子和细胞机制,对于制定有效治疗策略和改善临床结局至关重要。
引言
细胞因子风暴是指由过度激活的免疫反应引起的一系列临床表现,其特征是细胞因子释放增加,可导致严重且常危及生命的组织损伤和器官损伤。最初于1993年被描述为异基因骨髓移植的严重不良反应,其临床表现与同年首次被观察到的巨噬细胞活化综合征(MAS)极为相似。自首次描述以来,细胞因子风暴已在多种情况下被观察到,包括遗传性疾病(例如家族性(即原发)噬血细胞性淋巴组织细胞增生症(HLH)和穿孔素通路相关疾病)、感染性疾病(如脓毒症或流感/COVID-19相关肺炎)、以及风湿性疾病或自免疾病(如系统性红斑狼疮、川崎病和炎症性肠病)。此外,恶性肿瘤(如淋巴瘤)和免疫调节疗法(包括CAR T疗法)也可能引发细胞因子风暴。细胞因子风暴有时被称为MAS、继发性HLH、细胞因子风暴综合征或细胞因子释放综合征(CRS),这些名称的统一病理生理学和临床特征表明,细胞因子风暴可能共享同一个机制通路。
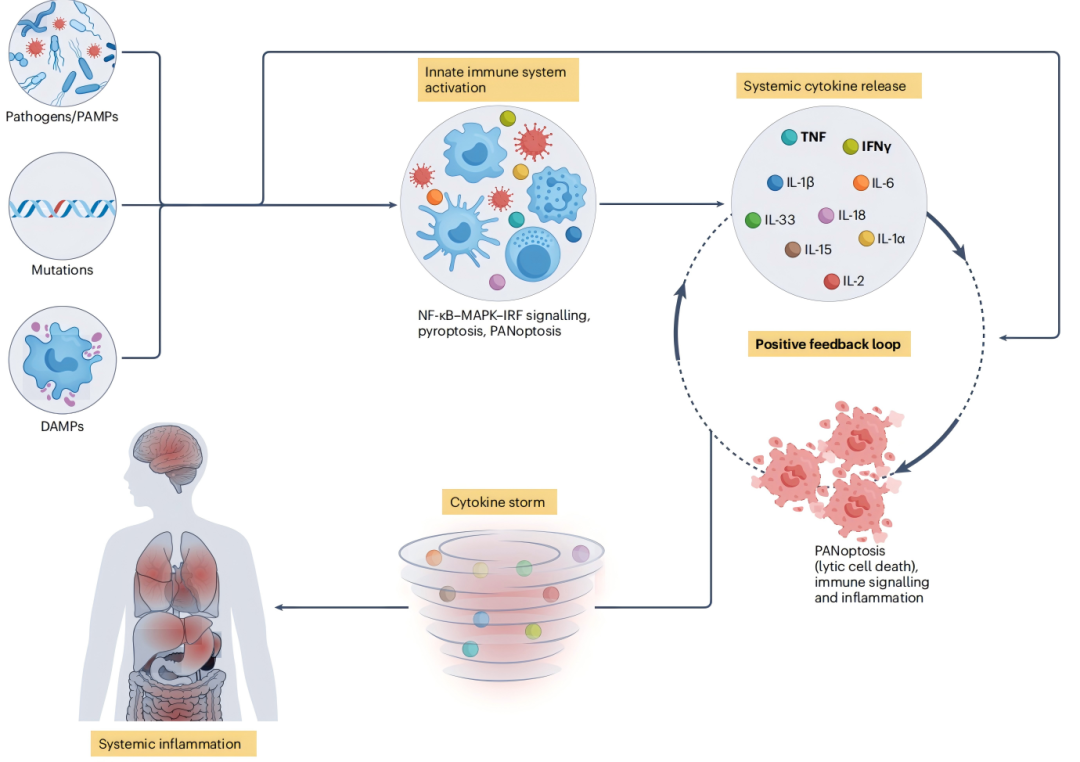
图1 细胞因子风暴起始与放大的示意图。
本综述探讨了细胞因子风暴的分子与临床特征,包括其流行病学、病理生理学、临床管理及治疗策略。鉴于细胞因子风暴在多种疾病中造成的严重临床负担,深入理解其潜在机制将有助于开发更具针对性的疗法,以减轻炎症反应并改善患者预后。研究显示,细胞因子风暴的确切发病率尚不明确。其诱因复杂多样,既可能由单一基因缺陷引发,也可能由病原体感染、自身免疫反应、自身炎症或治疗干预等因素导致,因此相关流行病学研究面临诸多挑战。
1.单基因细胞因子风暴
直接导致细胞因子风暴的遗传疾病罕见但确实存在。典型案例是原发HLH,患者存在控制CTL细胞和NK细胞免疫激活的基因突变(如PRF1、UNC13D、STX11和STXBP2),导致持续的T细胞和巨噬细胞活化,进而引发全身性细胞因子释放和损伤。原发HLH的发病率因种族和地理区域而异。德克萨斯州原发HLH患病率报道为每10万儿童1例,而瑞典则为每100万儿童1.2例。遗传缺陷也可通过破坏免疫稳态调节的其他方面来驱动细胞因子风暴。如导致过度炎症小体激活的突变会驱动炎症因子IL-1β和IL-18的释放,同样可引发细胞因子风暴。法国报道NLRP3的特定突变可导致冷吡啉相关周期性综合征,发病率每百万人中1至3例(患病率约1/36万);而家族性地中海热综合征中MEFV突变在亚美尼亚和土耳其的发病率范围为每500-1000人1例,在中欧地区则为每465,500人1例。NLRC4是另一种炎症小体激活因子,但由于其罕见性,目前突变率仍不明确。此外,回顾性流行病学研究可能误分类为败血症或婴儿期不明原因猝死而低估了其发生率和患病率。在资源匮乏地区基因检测和免疫学研究很少,统计频率也可能被低估。
2.非单基因细胞因子风暴研究报告显示存在多种非单基因性细胞因子风暴类型。从流行病学角度而言,被称为继发性HLH(病理生理学特征与原发HLH相似,但无相应基因突变)的临床状态,可被视为这些非遗传性细胞因子风暴的替代指标。感染性、炎症性或恶性疾病及其治疗均可诱发继发性HLH。英国一项评估继发性HLH的研究指出,2003年至2018年间发病率增长了四倍。5岁以下儿童发病率不变,老年患者HLH发病率的增加很可能反映了临床识别率的提高。SARS-CoV-2疫情进一步提升了细胞因子风暴综合征的认知。此外许多可导致继发性HLH的疾病(如炎症性肠病)发病率亦呈上升趋势,说明细胞因子风暴发病率的上升可能是真实发病率的增加与对该病症认知度提升的共同作用。病原体诱导的细胞因子风暴。由于感染诱因和细胞因子风暴临床定义的差异性,病原体诱导的细胞因子风暴的流行病学特征很难评估。许多感染具有季节性和地理变异性,因此可能引发细胞因子风暴的感染(如登革热)呈地方性流行,后续细胞因子风暴的发病率和患病率也存在显著的地域差异。如EBV引发的细胞因子风暴是感染性细胞因子风暴的经典案例,但其患病率因地理区域而异,亚洲和南美洲慢性活动性EBV患者的细胞因子风暴发生率高于美国。SARS-CoV-2继发的细胞因子风暴在新冠疫情期间备受关注,ICU中新冠患者的继发HLH发生率为8.7%。脓毒症也常与细胞因子风暴相关,全球范围内脓毒症的发病率约为677.5/10万,但细胞因子风暴的患病率没有充分记录。自身免疫性或自身炎症性细胞因子风暴。自免疾病或自身炎症性疾病是细胞因子风暴的另一明确病因。MAS特指由自身免疫性疾病引发的细胞因子风暴或HLH。据估计,约10%的系统性幼年特发性关节炎(sJIA)病例并发MAS,其中30%-40%的患者存在MAS的亚临床特征。类似地,10%的儿童期SLE患者报告出现MAS,研究显示MAS几乎可作为所有风湿性疾病的并发症。恶性肿瘤诱发的细胞因子风暴。恶性肿瘤相关细胞因子风暴是成人患者中最常见的类型,在儿科罕见。约40%-60%的成人细胞因子风暴或继发性HLH病例由恶性肿瘤引起。2012年至2018年间,恶性肿瘤相关细胞因子风暴或HLH的发病率估计为每10万成人中约0.45例。恶性肿瘤相关细胞因子风暴或HLH可发生于任何类型的癌症,但最常见于淋巴瘤患者。治疗性干预诱发的细胞因子风暴。免疫调节疗法(包括CAR T疗法、抗体及BiTE)已成为多种恶性肿瘤,尤其是血液肿瘤的主要治疗手段。CAR T及其他T细胞衔接疗法可诱导强烈的CRS。尽管CAR T疗法后CRS的发生率和频率因CAR载体及疾病类型而异,但严重程度与疾病负荷最为显著相关。研究报道在CAR T疗法的早期试验中CRS发生率为88–93%,≥3级的重度CRS发生率较高。随着CAR T被更早应用于疾病负荷较低的患者,以及CRS管理策略的改进,重度CRS发生率显著下降至约50%。此外遗传差异可能影响细胞因子风暴易感性,进一步增加了流行病学分析的复杂性。如在sJIA中,因炎症小体传感器(如NLRC4和NLRP3)激活突变导致循环IL-18水平升高的患者,表现出更高的细胞因子风暴或MAS倾向。因此,细胞因子风暴源于环境因素与个体遗传因素之间的复杂相互作用,进一步强调了理解其流行病学和分子机制对治疗开发的关键性需求。机制/病理生理学
细胞因子风暴始于先天免疫细胞识别病原体、PAMPs或DAMPs时释放细胞因子,并启动一系列炎症信号通路级联反应,包括NF-κB和裂解性炎症细胞死亡信号传导,进一步释放炎症细胞因子、趋化因子、警报素及DAMPs。正常情况下先天免疫系统能高效解决炎症并恢复稳态,细胞因子的短半衰期使其作用局限于炎症部位,将全身性影响降至最低。但是循环系统中细胞因子的升高可驱动旁分泌信号传导,进而引发免疫细胞与非免疫细胞的细胞因子过度产生,同时导致炎症细胞死亡、免疫稳态失调以及重要组织器官损伤。在这种病理状态下直接导致细胞因子风暴。
1.细胞因子风暴的时间进程
细胞因子风暴可概括为从发病到放大、达到高峰或危象,最终至免疫反应消退/衰竭四个交叠的阶段(图2)。在发病阶段(数小时至2天),病原体、PAMPs和DAMPs激活先天免疫传感器,导致促炎细胞因子通过分泌途径或通过炎症性溶细胞死亡(如焦亡和泛凋亡)释放。在放大阶段(第2-5天),巨噬细胞和中性粒细胞的逐渐活化,以及TH1-TH17淋巴细胞的募集,加剧了细胞因子和补体(如C3a和C5a)的释放,以及炎症性细胞死亡(泛凋亡)的诱导,从而改变血管通透性、驱动组织浸润并维持前馈炎症循环。对于进展至高峰或危象阶段(第5-10天)的患者,全身表现变得严重,包括急性呼吸窘迫综合征(ARDS)、血细胞减少、凝血功能障碍和多器官功能障碍。过量的DAMPs和细胞因子释放激活血小板、内皮细胞以及免疫细胞,驱动促凝血级联反应和内皮损伤。最终,在消退期或衰竭期,免疫系统逐渐萎缩,免疫细胞被清除出体外;或发展为免疫麻痹状态,免疫细胞无法有效应对刺激,丧失关键的宿主防御功能。
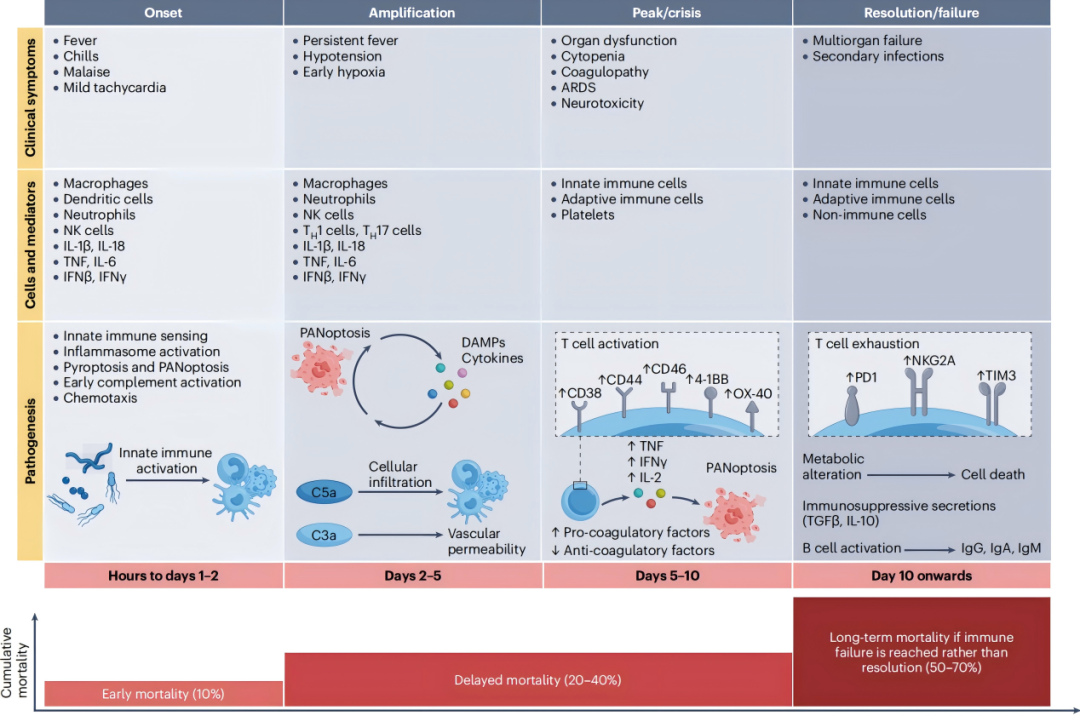
图2 细胞因子风暴中免疫及病理生理事件的时间进程。
2.免疫细胞的作用
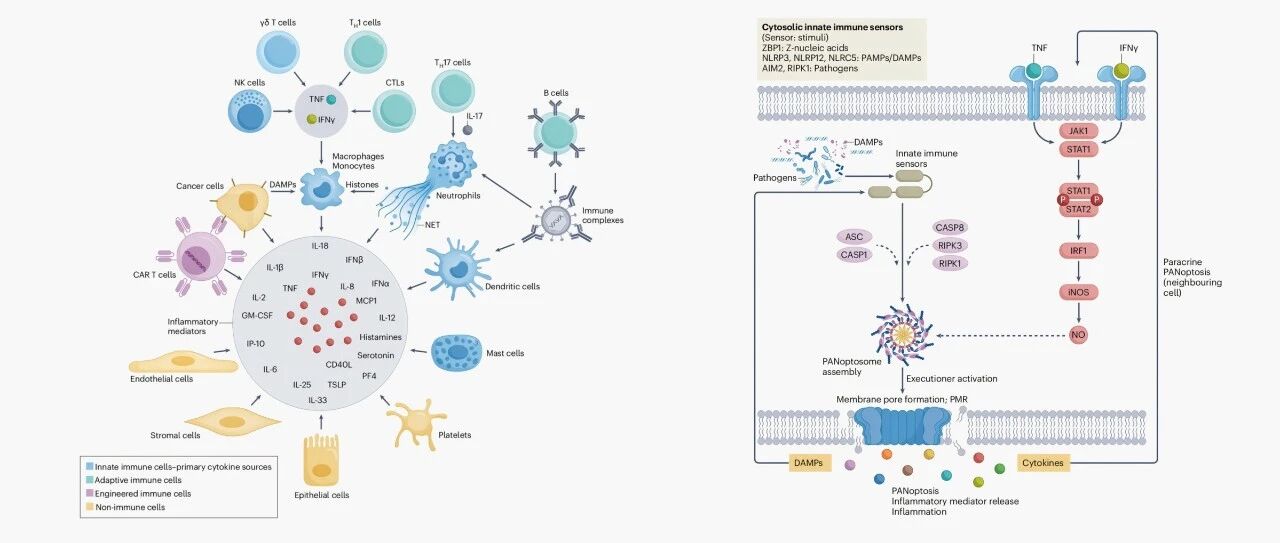
细胞因子的过度释放和失控会引发细胞因子风暴,推动疾病从发病到加剧直至达到高峰。IL-1家族细胞因子(如IL-1β和IL-18)、IL-6、TNF和IFNγ可能是该病症最重要的驱动因素。先天性和适应性免疫细胞与细胞因子风暴相关疾病存在关联,并可能促进细胞因子的释放。先天免疫细胞通常参与细胞因子风暴的起始阶段,而适应性免疫细胞维持炎症反应,非免疫细胞则在后期阶段促进细胞因子产生(图2和图3)。细胞因子生成后,其释放可通过炎症性细胞溶解性死亡途径,或通过非溶解性细胞因子释放途径(如经典与非经典分泌途径)实现。
先天免疫细胞。先天免疫细胞是细胞因子风暴的起始核心,主要包括巨噬细胞、单核细胞、中性粒细胞、树突状细胞、NK细胞、肥大细胞和γδT细胞。它们通过模式识别受体检测PAMPs、DAMPs及稳态破坏,激活相关信号通路,上调IL-6、TNF、IL-1家族等炎症细胞因子转录,其中IL-1β、IL-18需炎症小体激活才能成熟释放。炎症小体传感器基因突变会导致其过度激活,引发细胞因子过量释放,与多种自身炎症性疾病如冷吡啉相关周期性综合征、家族性地中海热和MAS有关。IL-1家族细胞因子在COVID-19、sJIA等疾病中起关键作用,但IL-1阻断治疗重症COVID-19效果有限,提示其他细胞因子也参与病理过程(图2和图3)。
细胞层面,单核细胞和组织驻留巨噬细胞释放大量IL-1β、IL-6、TNF,是风暴起始的主要贡献者(图3)。在HLH和MAS中,巨噬细胞过度活化,导致噬血细胞现象、血细胞减少及细胞因子过度产生。除这些细胞外,其他多种先天免疫细胞也以情境依赖性方式释放细胞因子。在COVID-19中,NK细胞和类固有γδT细胞通过分泌高水平IFNγ和TNF参与细胞因子风暴。这些细胞因子协同触发炎症性细胞死亡并加剧组织损伤,如SARS-CoV-2感染、脓毒症和HLH的临床前模型所示(图1)。此外,在COVID-19中,浆细胞样树突状细胞浸润肺部并激活巨噬细胞以放大细胞因子风暴。
除直接产生细胞因子的先天免疫细胞外,中性粒细胞也通过失调的中性粒细胞胞外诱捕网(NETs)释放促进炎症、组织损伤和血栓形成,从而参与细胞因子风暴。在脓毒症和COVID-19中,过量的NET成分作为DAMPs诱导炎症性细胞死亡,并导致凝血功能障碍和急性呼吸窘迫综合征(ARDS)。在SLE中,NET作为自身抗原持续激活免疫系统,促使浆细胞样树突状细胞释放IL-1β和IFNα等细胞因子(图3)。
适应性免疫细胞。适应性免疫细胞在细胞因子风暴的放大及高峰期起关键作用,虽发病阶段参与度不及先天免疫细胞,但会促进细胞因子过量释放。CD4+ T细胞(尤其是TH1、TH17)过度活化,分别分泌IFNγ、IL-17,激活巨噬细胞、募集中性粒细胞,加重COVID-19、HLH和自免疾病的损伤;CD8+ T细胞释放细胞因子并杀伤感染细胞,释放的PAMPs/DAMPs会持续诱导细胞因子产生;失调的Treg细胞无法抑制过度免疫,导致细胞因子风暴持续。B细胞不直接驱动,但通过产生自身抗体形成免疫复合物,激活巨噬细胞、中性粒细胞,间接促细胞因子释放,其过度活化也导致IL-6、TNF分泌,抗CD20治疗可减少相关疾病的细胞因子产生。此外,适应性与先天免疫细胞的细胞因子产生机制存在关联,如CAR-T疗法中,肿瘤细胞被快速杀伤释放的DAMPs,会激活先天免疫细胞产生多种炎症细胞因子(图3)。
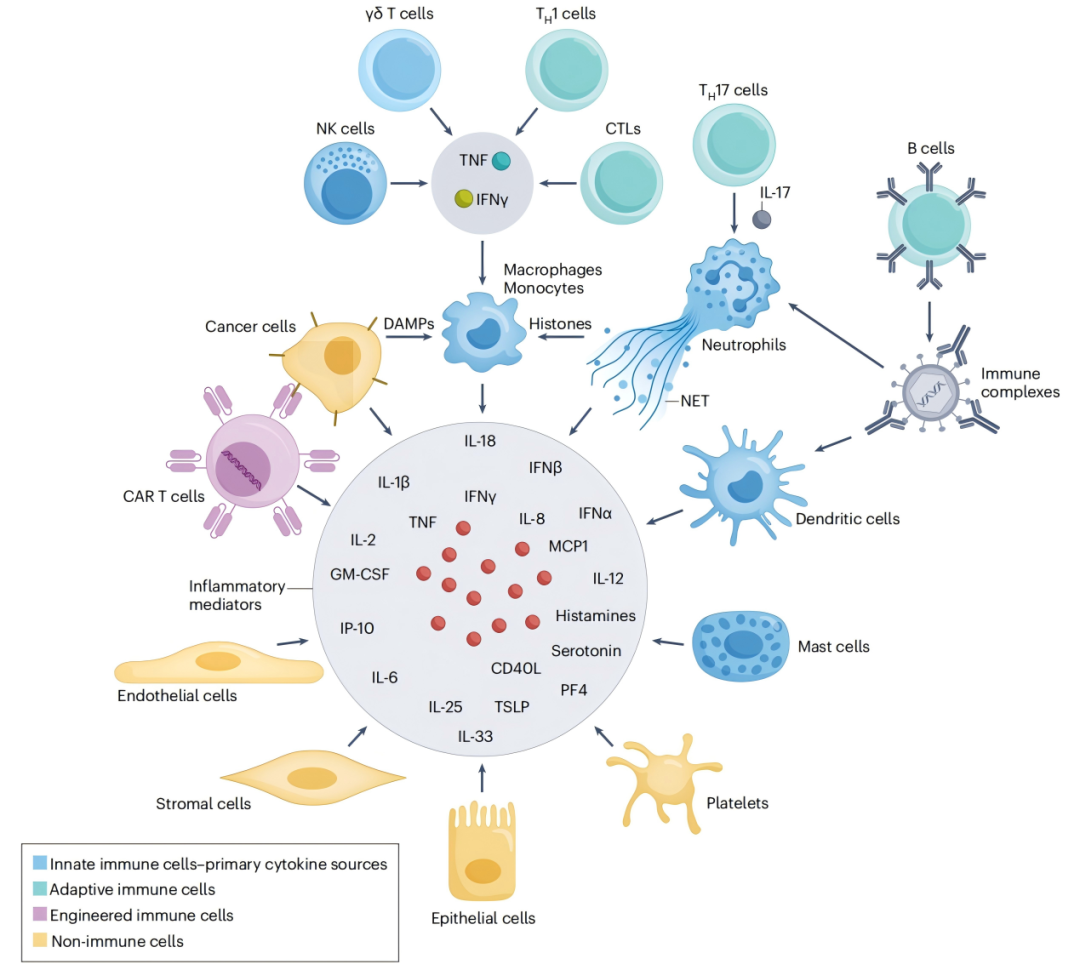
图3 细胞因子风暴中的细胞与细胞因子网络
3.细胞因子风暴的放大效应
细胞因子风暴的初始细胞因子释放有两种途径:细胞信号传导驱动生成释放,或炎症细胞死亡时膜穿孔导致外渗。焦亡、泛凋亡等溶细胞死亡途径均会促进释放。风暴中持续升高的细胞因子会破坏免疫稳态,被邻近细胞先天免疫传感器识别后,诱导旁分泌性泛凋亡,引发炎症性细胞死亡并进一步释放细胞因子,形成自我放大循环,导致持续免疫激活和全身组织损伤(图1和图4)。
泛凋亡与炎症性细胞死亡。泛凋亡是由先天免疫传感器启动、半胱天冬酶和RIPKs驱动的溶细胞型先天免疫细胞死亡通路。面对病原体、PAMPs、DAMPs及稳态失衡时,先天免疫传感器会激活形成泛凋亡体复合物,引发细胞死亡并释放细胞因子与DAMPs,细胞因子本身也可触发这一过程。ZBP1是关键传感器,可响应流感病毒、SARS-CoV-2等,还受ADAR1调控,其突变关联多种自身炎症性疾病。此外,NLRC5、NLRP12、RIPK1、AIM2、NLRP3等也可作为泛凋亡体传感器,分别响应不同刺激,在相关疾病中驱动炎症与细胞死亡(图4)。
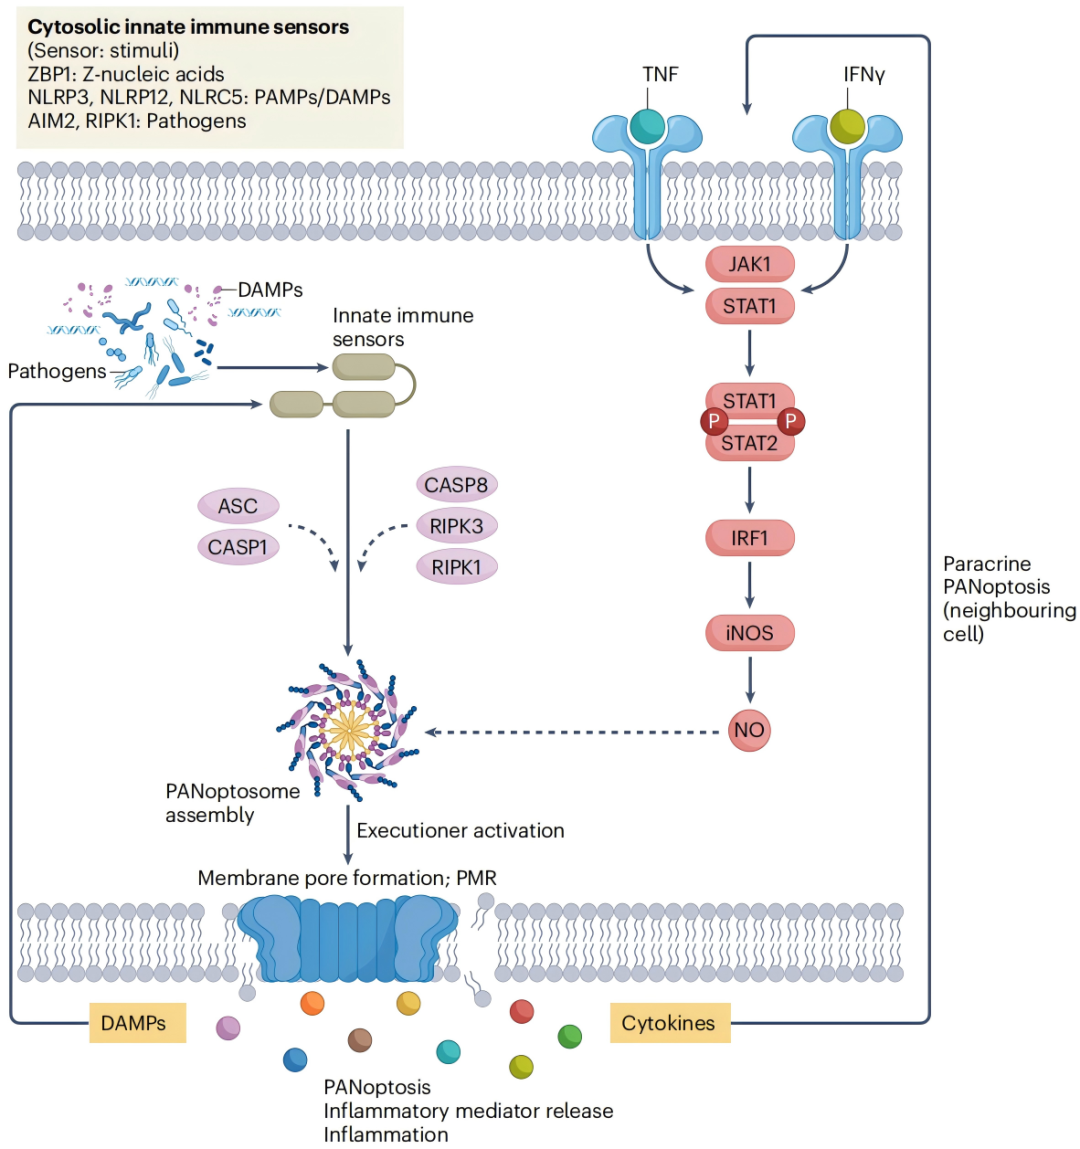
图4 细胞因子风暴放大中的先天免疫传感器与泛凋亡
细胞因子与泛凋亡--放大环路。泛凋亡的下游共性是激活caspase 8及其他caspases、RIPKs,引发细胞裂解和质膜破裂(涉及NINJ1),释放细胞因子与DAMPs以持续炎症。细胞因子无论通过细胞裂解还是NF-κB等信号通路释放,均可驱动旁分泌泛凋亡:TNF与IFNγ共同激活JAK1-STAT1信号通路,经IRF1诱导一氧化氮生成,进而激活caspase 8和RIPK3介导的泛凋亡。二者足以引发风暴,其相关机制参与新冠免疫病理,中和它们能改善新冠等疾病的风暴症状。综上,泛凋亡激活与细胞因子释放形成正反馈环路,是细胞因子风暴的核心分子基础(图1和图4)。
诊断、筛查与预防
1.体征与症状
细胞因子风暴是一个涵盖多种危及生命的临床综合征的总称。因此,其症状、严重程度、发病时间及持续时间存在显著差异。临床表现还取决于潜在病因、疾病诱因及患者接受的治疗方案。尽管初始病理过程存在差异,后期阶段常有相似的临床表现。症状通常始于非特异性全身症状,如持续发热、疲劳、厌食、头痛,部分病例还可能出现腹泻、关节痛、肌痛及神经精神症状(例如意识模糊、激越或情绪改变)(图5)。急性肝损伤和中枢神经系统受累(表现为脑病或癫痫发作)是严重细胞因子风暴的常见早期特征。若进展迅速可伴严重并发症,包括DIC、低血压、呼吸困难和低氧血症,以及血管扩张性休克。疾病晚期也常见肾衰竭和心肌病。许多患者还会出现咳嗽和呼吸急促等呼吸道症状,这些症状可能发展为ARDS(图5)。因此,及早诊断细胞因子风暴、及时治疗将具有挽救生命的意义。
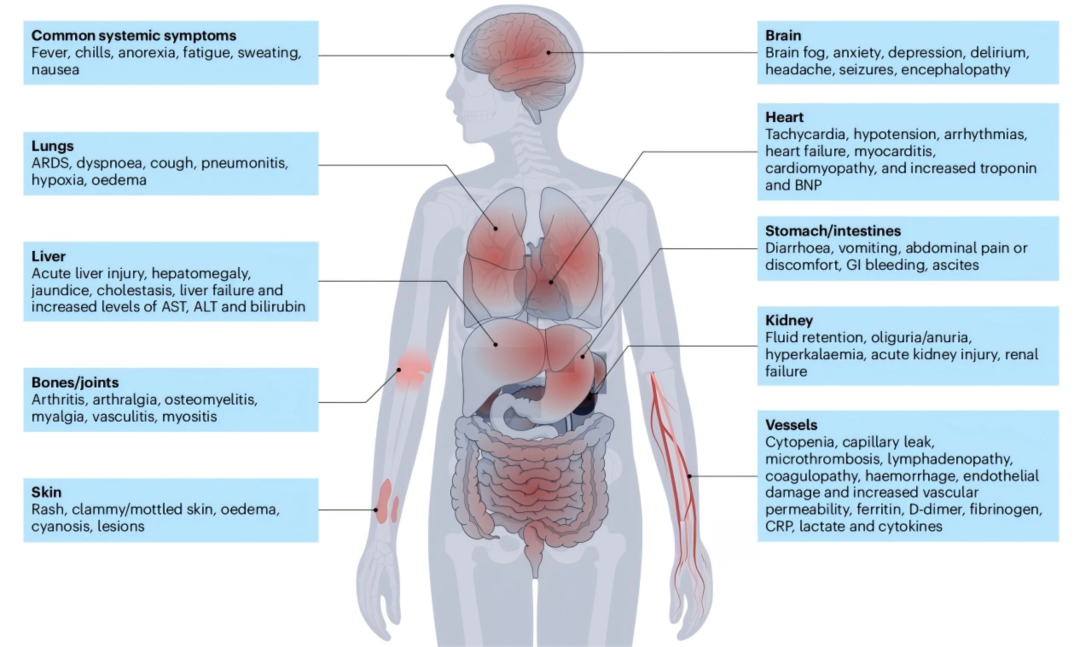
图5 细胞因子风暴相关的临床表现及器官特异性并发症
2.实验室检查结果
细胞因子风暴病例的实验室检查结果因潜在病因不同而异,但均具有与全身炎症相符的共同特征。但是目前无特异性生物标志物。细胞因子风暴的典型特征是全身循环中炎症标志物的释放。常规非特异性炎症标志物在细胞因子风暴中通常也升高。C反应蛋白在循环中持续增加,浓度与疾病严重程度相关。患者常伴有高甘油三酯血症及血细胞计数异常,包括白细胞减少、白细胞增多、血小板减少和贫血,可伴随D-二聚体升高和FIB浓度降低。证据表明,血细胞数量变化可能是由细胞因子诱导的免疫细胞生成与动员、免疫介导的细胞溶解以及趋化因子诱导的迁移之间的复杂相互作用所致。血小板减少的存在很可能是骨髓生成不良(白血病浸润)、肝脾肿大导致的外周消耗、DIC或血栓性微血管病的共同作用。细胞因子风暴常呈现临床DIC特征,因此血小板减少是重要的诊断线索。
在炎症标志物中,诊断细胞因子风暴最特异的标志物之一是循环中铁蛋白浓度异常升高。特异性诊断阈值未定,但高浓度时应触发对细胞因子风暴的评估。例如,在Still病相关MAS患者中,循环铁蛋白中位浓度>5,000 ng/ml。参与疾病发病机制的细胞因子在细胞因子风暴患者中循环浓度升高。在CAR T细胞诱导的细胞因子风暴中,IL-6和T细胞活化标志物sIL-2Rα链(亦称sCD25)增加,干扰素通路中的分子(包括IFNγ及干扰素诱导趋化因子CXCL9和CXCL10)也升高。Still病伴MAS患者的循环中CXCL9浓度升高也反映了IFNγ活性增强。IL-18作为IFNγ的强诱导剂,在MAS患者循环中也显著升高。川崎病相关细胞因子风暴中的过度T细胞活化伴随sIL-2R浓度升高及IL-17生成增加。
3.筛查与预防
细胞因子风暴通常由潜在的临床疾病引起,明确病因至关重要。需综合评估患者的潜在基础疾病。患者可能需要进行很多检测确诊遗传性疾病、自免疾病或自身炎症性疾病,感染或肿瘤性疾病。区分由医源性原因(如CAR T疗法)与由全身性感染或自身炎症性疾病病因至关重要,因为两者的临床管理策略存在差异。细胞因子风暴常见于病毒感染期间出现免疫反应失调、过度反应的患者,因此对腺病毒、EBV、CMV、HHV6、HHV8、HIV或SARS-CoV-2等感染的诊断尤为重要。细胞因子风暴也可能出现在自免疾病(如SLE)或血液肿瘤(如淋巴瘤和白血病)患者中,所以疑似病例都应进行全面的排查。
筛查与诊断过程中的多重挑战使得早期治疗难以实施,而早期治疗往往对患者病情改善至关重要。因此,许多临床策略都聚焦于预防。由于许多病例由病原体诱发,避免感染并维持微生物组稳态可降低细胞因子风暴风险。其他预防措施同样具有益处,如酪氨酸羟化酶拮抗剂甲基酪氨酸可降低儿茶酚胺水平与细胞因子反应,肾上腺素能受体拮抗剂也对过度炎症刺激有保护作用,表明其预防细胞因子风暴的潜力。对于治疗干预诱发的细胞因子风暴,需筛查预测患者对特定药物产生细胞因子风暴的倾向。对于接受免疫治疗的个体,评估患者状况并调整给药剂量可降低细胞因子风暴风险。
治疗管理
细胞因子风暴的治疗通常侧重于识别导致初始免疫失调的潜在疾病,并评估患者临床病情的严重程度,根据病因和严重程度制定的适当治疗方案(表1)。本文重点探讨细胞因子风暴本身的治疗而非基础疾病。早期进行干预常非常关键,可最大限度减少细胞因子风暴导致的组织损伤和潜在器官衰竭。由于缺乏明确的诊断标准或细胞因子阈值,早期治疗面临挑战。美国风湿病学会-欧洲抗风湿病联盟关于MAS共识报告的官方推荐中详细列出了可用于治疗细胞因子风暴的多种药物类别。
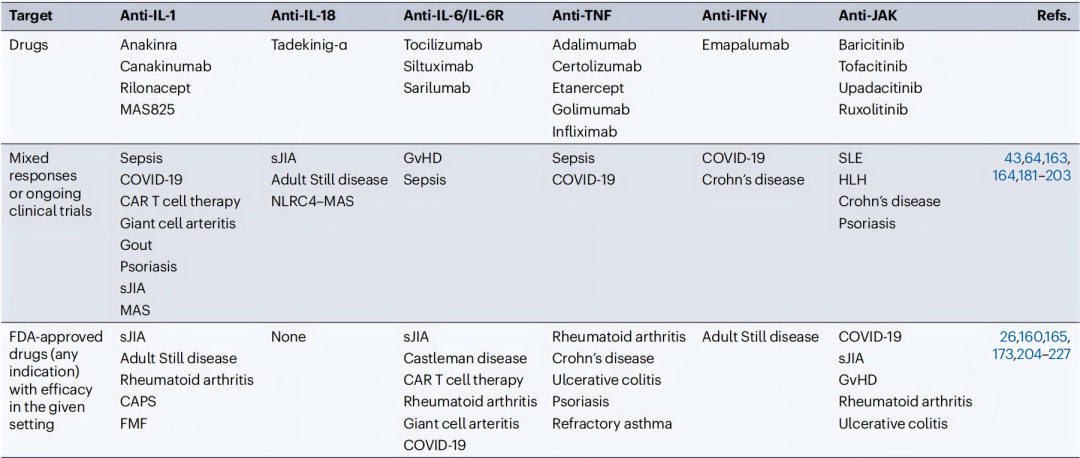
表1 针对细胞因子通路的靶向治疗
1.糖皮质激素
糖皮质激素是强效抗炎药物,可抑制多种炎症通路,包括NF-κB信号传导、促炎细胞因子与趋化因子的合成以及淋巴细胞增殖,同时还能增强抗炎细胞因子(如IL-10或IL-1Ra)的产生,抗炎作用显著,是治疗细胞因子风暴的关键药物。治疗通常从每日静脉注射甲泼尼龙冲击疗法开始,持续3天,随后减低剂量。地塞米松也被推荐用于原发HLH相关细胞因子风暴。自免疾病导致的细胞因子风暴糖皮质激素疗效最佳。糖皮质激素可能削弱CAR T细胞的治疗效果,并增加感染风险,因此要考虑更特异的靶向治疗方案。
2.细胞因子抑制剂
针对循环细胞因子的靶向治疗常用于细胞因子风暴的管理。细胞因子风暴的主要病理生理学通路之一是IL-1生物活性升高,抑制IL-1可减轻过度炎症反应。首个针对IL-1通路开发的特异性抑制剂是Anakinra,一种半衰期较短的重组IL-1受体拮抗剂。该药物可用于COVID-19患者、严重过度炎症患者以及其他疾病尤其是Still病相关细胞因子风暴。Anakinra也可用于脓毒症、sJIA和COVID-19患者相关CRS。抗IL-1β单抗Canakinumab能够抑制IL-1的生物活性,却存在若干缺点:仅抑制IL-1β而不抑制IL-1α,半衰期较长,在严重疾病中可能具有危害性,中枢神经系统渗透性较差,成本也远高于Anakinra,导致应用范围受限。
IL-6阻断疗法在治疗COVID-19细胞因子风暴中的具体应用结果存在分歧。抗IL-6R抗体Tocilizumab常用于CAR T疗法后的CRS治疗,由于血脑屏障存在,其对细胞因子相关神经毒性无效。目前正在研究含转基因细胞因子释放基因盒的CAR T细胞来降低细胞因子风暴风险。FDA已批准抗IL-6R单抗作为COVID-19的治疗药物,而且对sJIA、脓毒性休克等相关细胞因子风暴有效。
另一种减轻细胞因子风暴发病机制的靶点是IFNγ。抗IFNγ中和抗体Emapalumab对原发HLH或常规治疗无效的细胞因子风暴具有疗效,对高剂量糖皮质激素治疗无效的Still病相关细胞因子风暴患者也具有疗效。由于IFNγ是宿主抗菌防御的重要组成部分,应监测这些患者潜在的感染性并发症并及时治疗。
3.JAK抑制剂
与细胞因子风暴相关的多种促炎细胞因子会通过JAK激活细胞级联反应,如IFNγ信号通过JAK1和JAK2,IL-2通过JAK1和JAK3,IL-12通过JAK2,IL-15通过JAK1和JAK3传导。此外,TNF和IFNγ需要JAK-STAT信号通路来诱导泛凋亡,并驱动细胞死亡与细胞因子风暴之间的正反馈循环。因此JAK抑制剂有望成为细胞因子风暴的广泛治疗手段。Ruxolitinib可改善儿童HLH患者的预后,JAK抑制剂Baricitinib在新冠治疗中显示出疗效。
4.依托泊苷
依托泊苷是一种通过抑制拓扑异构酶II功能导致DNA双链断裂的化疗药物,在细胞因子风暴(尤其是原发HLH)治疗中已取得良好效果,与类固醇联合用药可能对感染或癌症引起的严重或难治性继发HLH有效。对患者整体生存期的影响尚不明确,在风湿性疾病相关的细胞因子风暴中仅作为二线或三线治疗使用。
总体而言,细胞因子风暴的治疗方案较为复杂,通常靶向导致过度炎症的病理生理过程的不同组分。细胞因子风暴的异质性要求个体化治疗,而非对所有病例采用单一疗法。此外,成功的细胞因子风暴治疗应包括针对基础疾病及引发过度炎症的免疫信号通路和机制的积极治疗,以最大限度地提高患者获益。
生活质量
细胞因子风暴对生活质量的影响可能并非永久性。目前细胞因子风暴对患者生活质量的长期影响研究不足。对于由已消退的继发细胞因子风暴患者,其生活质量影响可能低于慢性细胞因子风暴患者。有研究显示,在COVID-19过度炎症综合征后3个月和6个月时,未发现对生活质量的影响。相比之下,对于诊断为HLH的儿科患者,其生活质量在确诊后第一年低于健康对照组,在确诊后5年时,HLH患者与未确诊HLH的患者没有生活质量差别。
展望
细胞因子风暴机制复杂、触发因素多样,但其核心分子机制已逐步明确,为新型靶向疗法和联合疗法奠定基础。目前正优化动物模型以贴合临床炎症反应,加速治疗研发。
诊断与筛查是另一研究重点:当前诊断流程复杂、标准混乱,细胞因子快速生成要求及时诊断,亟需开发特定生物标志物和明确临床标准,同时需按细胞因子水平分层风险群体。随着精准医疗发展,结合AI与机器学习分析患者数据,可实现个体化治疗和快速诊断,改善生存率。总体而言,细胞因子风暴在当前临床环境中仍具挑战性;然而,对基础生物学机制的持续认识进展以及诊断方法的改进,为未来细胞因子风暴的管理提供了希望。宏望医学建议对细胞因子风暴患者的病因进行详细排查,针对可能发生细胞因子风暴的患者如CAR T治疗后、淋巴瘤患者、感染EBV患者、HLH患者等监测细胞因子变化,可以选择以下细胞因子和HLH相关检测项目,结合受检者的临床表现,诊断是否发生了细胞因子风暴,及时进行干预处理,避免造成严重后果。项目推荐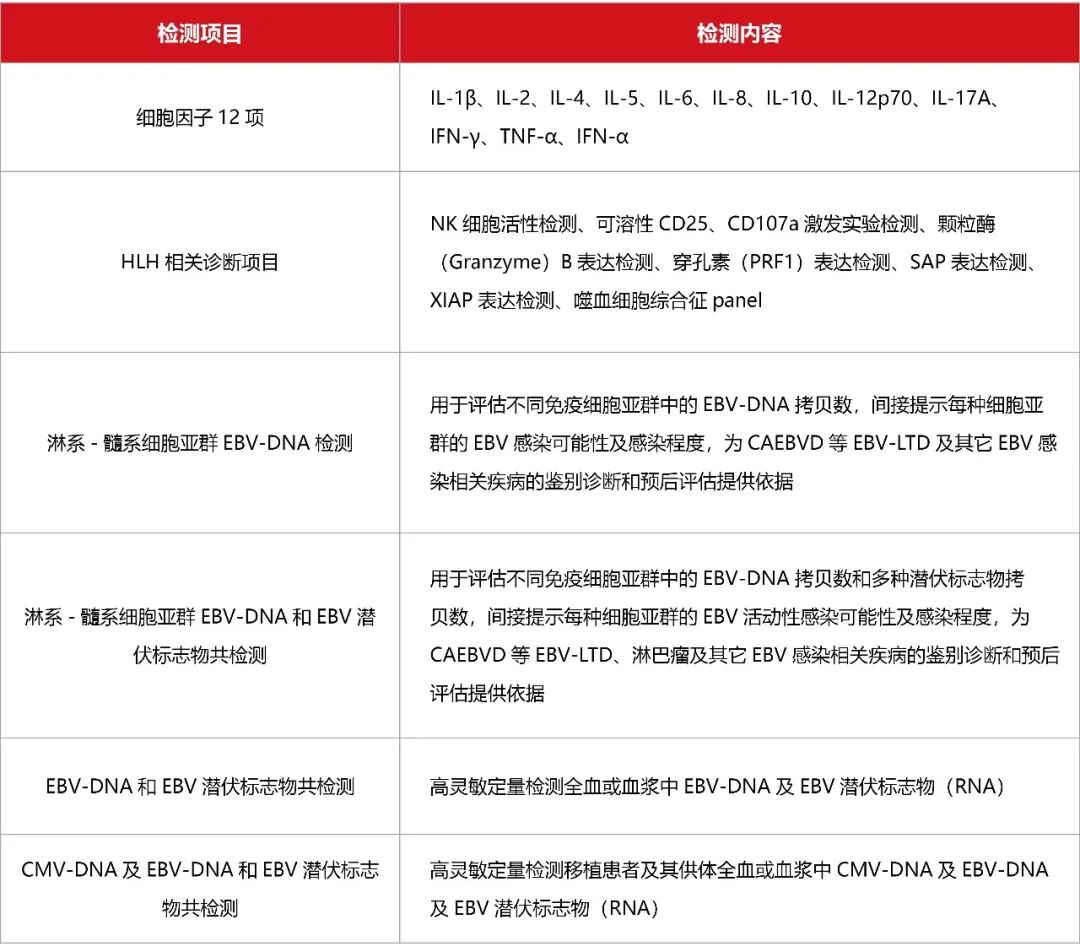
参考文献
Karki, R., Netea, M.G., Diorio, C. et al. Cytokine storm. Nat Rev Dis Primers 12, 1 (2026).